膜電位の変化は?イオンチャネルとの関係も!(濃度勾配:電気化学的勾配:イオンポンプ:興奮など)
膜電位の変化は?イオンチャネルとの関係も!(濃度勾配:電気化学的勾配:イオンポンプ:興奮など)
神経細胞や筋細胞は、細胞の内側と外側にあるイオンの偏りを利用して情報を伝えています。
このとき中心となるのが膜電位であり、イオンチャネルの開閉、濃度勾配、電気的な引力、イオンポンプの働きが複雑に関係します。
膜電位の変化を理解すると、神経の興奮や筋肉の収縮、薬が作用する仕組みまでつながって見えてくるでしょう。
膜電位変化の全体像
それではまず膜電位の変化について解説していきます。
静止膜電位の基本
膜電位とは、細胞膜を隔てた内側と外側の電圧差のことです。
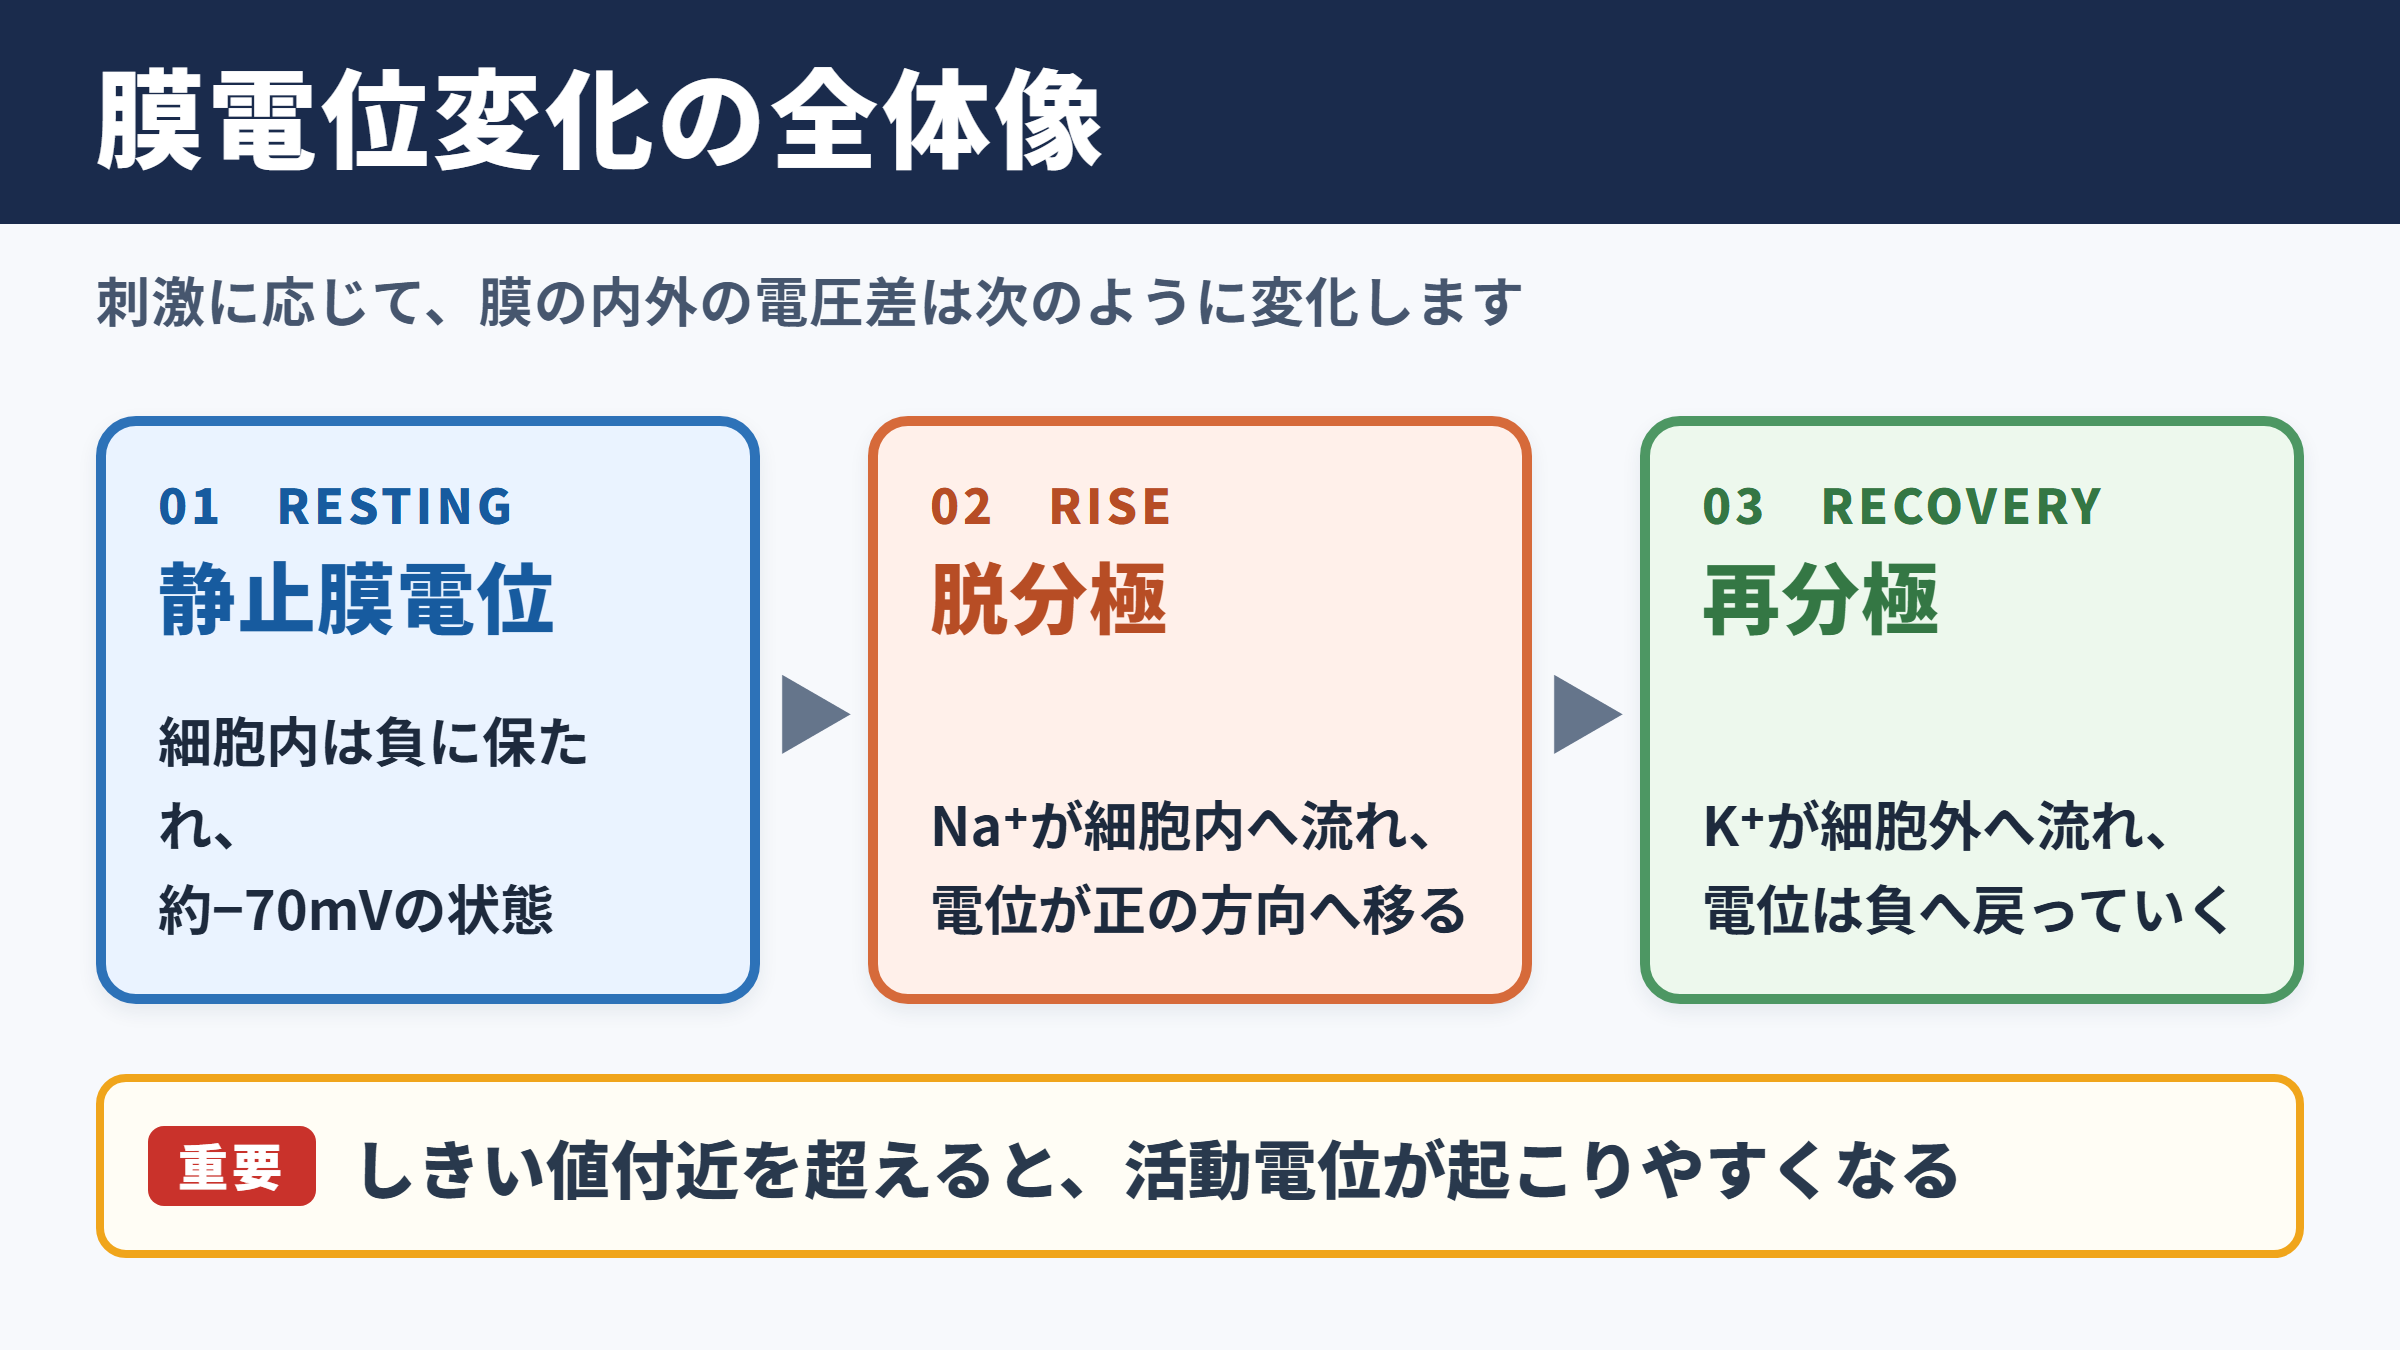
神経細胞が刺激を受けていない状態では、細胞内は細胞外よりも負に保たれており、これを静止膜電位と呼びます。
代表的な神経細胞では、静止膜電位はおよそマイナス七十ミリボルトです。
細胞内にはカリウムイオンが多く、細胞外にはナトリウムイオンや塩化物イオンが比較的多く存在します。
この分布の差が、膜電位を生み出す出発点になります。
ただし、イオンが単に偏っているだけでは電圧差は安定しません。
細胞膜がどのイオンを通しやすいかという透過性も、膜電位を決める重要な条件です。
静止状態の細胞膜はカリウムイオンを比較的通しやすいため、静止膜電位はカリウムイオンの影響を強く受けます。
脱分極と再分極の流れ
細胞が刺激を受けると、膜電位は静止状態から変化します。
細胞内の電位が負の方向からゼロ付近、さらに正の方向へ移る変化を脱分極と呼びます。
主にナトリウムイオンが細胞内へ流れ込むことで、内側の正電荷が増えるためです。
その後、ナトリウムイオンの流入が止まり、カリウムイオンが細胞外へ流出すると、電位は再び負の方向へ戻ります。
この回復過程が再分極です。
再分極の後には、一時的に静止膜電位よりも負になる過分極が見られる場合もあります。
興奮性の細胞では、この一連の変化が活動電位の基本的な波形となります。
膜電位がマイナス七十ミリボルトからマイナス五十五ミリボルト付近まで上昇し、しきい値を超えると活動電位が起こりやすくなります。
しきい値は細胞の種類や状態によって変わります。
興奮性細胞と非興奮性細胞
神経細胞、骨格筋細胞、心筋細胞などは、刺激に応じて大きな膜電位変化を起こす興奮性細胞です。
これらの細胞では、活動電位が情報伝達や収縮開始の合図になります。
一方で、多くの上皮細胞や分泌細胞も膜電位を持っていますが、神経細胞のような急激な活動電位を常に発生させるとは限りません。
膜電位は興奮の有無だけでなく、栄養素の輸送、分泌、細胞容積の調節にも関わります。
したがって、膜電位は神経だけの専門用語ではなく、細胞の働きを支える共通の基盤と考えると理解しやすいでしょう。
濃度勾配と電気化学的勾配
続いては濃度勾配と電気化学的勾配を確認していきます。
濃度差によるイオン移動
濃度勾配とは、ある物質の濃度が高い場所と低い場所の差です。
イオンは基本的に、濃度が高い側から低い側へ広がろうとします。
たとえば細胞外のナトリウムイオン濃度が高く、細胞内の濃度が低ければ、ナトリウムイオンには細胞内へ入ろうとする力が働きます。
反対に、細胞内に多いカリウムイオンは、通り道が開けば細胞外へ出ようとします。
この濃度差による移動の向きは、膜を挟んだ物質移動を考えるうえで欠かせません。
ただし、イオンは電荷を持つため、濃度だけで移動方向を判断すると不十分です。
電気的な力との重なり
陽イオンは負の電位をもつ側へ引かれ、陰イオンは正の電位をもつ側へ引かれます。
この電気的な力と濃度勾配を合わせたものが、電気化学的勾配です。
ナトリウムイオンの場合、静止膜電位にある神経細胞では、濃度勾配も電気的な力も細胞内への移動を後押しします。
そのためナトリウムチャネルが開くと、ナトリウムイオンは比較的勢いよく流入します。
一方、カリウムイオンでは、濃度勾配は外向きに働くものの、細胞内が負であることはカリウムイオンを内側へ引き戻す力になります。
二つの力の釣り合いが、各イオンの動きと膜電位を左右します。
| イオン | 主な高濃度側 | 静止状態での主な移動傾向 | 膜電位への主な影響 |
|---|---|---|---|
| ナトリウムイオン | 細胞外 | 細胞内へ流入 | 脱分極を促しやすい |
| カリウムイオン | 細胞内 | 細胞外へ流出 | 再分極を促しやすい |
| 塩化物イオン | 細胞外 | 細胞内へ流入しやすい | 膜電位を安定化しやすい |
| カルシウムイオン | 細胞外 | 細胞内へ流入 | 興奮や分泌の合図になりやすい |
平衡電位の考え方
特定のイオンについて、濃度勾配による力と電気的な力がちょうど釣り合う電位を平衡電位と呼びます。
平衡電位に達すると、そのイオンには見かけ上の正味の移動が起こりにくくなります。
ナトリウムイオン、カリウムイオン、塩化物イオンでは、それぞれ平衡電位が異なります。
細胞膜があるイオンだけを通すと仮定すれば、膜電位はそのイオンの平衡電位へ近づきます。
実際の細胞膜はいくつものイオンを通すため、膜電位は各イオンの透過性を反映した値になります。
イオンの平衡電位は、濃度比、電荷、温度をもとにネルンストの式で求められます。
生理学では計算結果そのものより、膜電位がどのイオンの平衡電位に近づくかを見る考え方が重要です。
イオンチャネルの開閉機構
続いてはイオンチャネルの働きを確認していきます。
選択的透過性の仕組み
イオンチャネルは、細胞膜に埋め込まれたたんぱく質の通り道です。
チャネルごとに通しやすいイオンが異なり、ナトリウムチャネル、カリウムチャネル、カルシウムチャネル、塩化物チャネルなどがあります。
イオンは脂質二重層を自由には通れませんが、対応するチャネルが開くと短時間で膜を横切れます。
この選択性により、細胞は必要なイオンだけを適切なタイミングで移動させます。
膜電位の急速な変化は、チャネルの開閉による透過性の変化として説明できます。
電位依存性チャネル
電位依存性イオンチャネルは、膜電位の変化を感知して開閉するチャネルです。
神経細胞の電位依存性ナトリウムチャネルは、しきい値を超える脱分極で素早く開きます。
ナトリウムイオンの流入が脱分極をさらに進めるため、短時間で大きな活動電位が形成されます。
続いて電位依存性カリウムチャネルが開くと、カリウムイオンが流出し、膜電位は再分極へ向かいます。
ナトリウムチャネルには不活性化という状態もあり、開いた直後に再び開けない時間が生じます。
この性質は、活動電位が同じ場所を逆向きに戻りにくくする理由の一つです。
活動電位は単なる電気の波ではありません。
ナトリウムチャネルの急速な活性化と不活性化、カリウムチャネルのやや遅い開口が組み合わさって生じる現象です。
化学受容体型チャネル
化学受容体型チャネルは、神経伝達物質などの化学物質が結合することで開閉します。
シナプスでは、前の神経細胞から放出された神経伝達物質が、次の細胞の受容体に結合します。
ナトリウムイオンなどが流入しやすいチャネルが開けば、膜電位は脱分極し、興奮性シナプス後電位が生じます。
塩化物イオンが流入しやすいチャネルやカリウムイオンが流出しやすいチャネルが開けば、膜電位はより負になり、抑制性の変化につながります。
興奮と抑制の信号は細胞体付近で統合され、しきい値を超えるかどうかが決まります。
この統合こそが、神経回路における情報選択の重要な場面です。
イオンポンプと濃度維持
続いてはイオンポンプと濃度維持の関係を確認していきます。
ナトリウムカリウムポンプ
ナトリウムカリウムポンプは、細胞膜に存在する輸送たんぱく質です。
ATPのエネルギーを使い、ナトリウムイオンを細胞外へ運び、カリウムイオンを細胞内へ運びます。
一般には、ナトリウムイオン三個を外へ出し、カリウムイオン二個を内へ入れる輸送として説明されます。
この働きによって、細胞外にナトリウムイオンが多く、細胞内にカリウムイオンが多い状態が長期的に維持されます。
ポンプ自体も電荷の移動に関わりますが、最も大きな役割は活動電位の材料となる濃度差の維持です。
ナトリウムカリウムポンプの輸送では、外へ出る陽イオンが一個多くなります。
そのため、ポンプはわずかに細胞内を負にする方向にも働きます。
受動輸送と能動輸送
イオンチャネルを通る移動は、基本的に電気化学的勾配に従う受動輸送です。
イオンは自らの濃度差と電位差が示す方向へ移動し、チャネルそのものがATPを直接消費するわけではありません。
これに対し、イオンポンプはATPを用いて、勾配に逆らう方向へイオンを運びます。
受動輸送と能動輸送は対立する働きではなく、細胞の恒常性を保つために補い合う関係です。
チャネルが短時間の信号変化を担い、ポンプが長時間の環境維持を担うと整理すると分かりやすいでしょう。
ポンプ機能低下の影響
酸素不足やエネルギー代謝の低下によってATPが不足すると、イオンポンプの働きも弱まります。
ナトリウムイオンが細胞内に蓄積しやすくなり、水も細胞内へ入りやすくなるため、細胞は膨張するおそれがあります。
カリウムイオンの分布も崩れ、静止膜電位を安定して保ちにくくなります。
神経や心筋では、膜電位の乱れが興奮性や伝導性の異常につながる可能性があります。
膜電位は目に見えない値ですが、エネルギー代謝の状態を反映する繊細な指標でもあります。
興奮と活動電位の伝導
続いては興奮と活動電位の伝導を確認していきます。
しきい値と全か無かの法則
神経細胞では、局所的な脱分極がしきい値に達すると活動電位が発生します。
しきい値に届かない小さな変化は減衰しやすく、大きな活動電位にはなりません。
一方で、しきい値を超えた後は、一定の大きさに近い活動電位が生じます。
これを全か無かの法則と呼びます。
刺激が強くなっても、一回の活動電位の高さが大幅に増えるというより、発生回数が増えることで情報の強さが表現されます。
刺激の強さは頻度として表されやすい点が、神経情報の特徴です。
不応期と一方向性
活動電位の直後、ナトリウムチャネルは不活性化状態になり、すぐには再び開けません。
この期間は絶対不応期と呼ばれ、どれほど強い刺激でも新しい活動電位は起こりにくい状態です。
その後は相対不応期に移り、通常より強い刺激であれば活動電位が生じることがあります。
不応期があるため、活動電位はすでに興奮した部分へ逆戻りしにくく、軸索を前方へ伝わります。
神経信号の一方向性は、チャネルの状態変化によって支えられています。
活動電位の伝導では、先に興奮した領域が一時的に反応しにくくなります。
この時間差が、信号を次の領域へ進ませる仕組みです。
有髄神経と跳躍伝導
有髄神経では、軸索の一部が髄鞘と呼ばれる構造で覆われています。
髄鞘は電気的な漏れを抑え、興奮が生じやすい場所をランビエ絞輪に集めます。
活動電位は絞輪から次の絞輪へ飛び移るように伝わり、これを跳躍伝導と呼びます。
跳躍伝導では、膜全体で連続して大きなイオン移動を起こす必要が少ないため、速く効率的な情報伝達が可能になります。
髄鞘が損なわれると伝導速度が低下し、神経信号が届きにくくなる場合があります。
イオンチャネルの配置と髄鞘の構造は、神経伝導の性能を左右する組み合わせです。
膜電位理解の要点
膜電位の変化は、細胞内外のイオン濃度差と電気的な引力が生む電気化学的勾配を基盤にしています。
ナトリウムイオンの流入は脱分極を起こしやすく、カリウムイオンの流出は再分極を進めやすい関係です。
イオンチャネルは短時間で膜の透過性を変え、活動電位やシナプス伝達を可能にします。
一方、イオンポンプはATPを使って濃度勾配を維持し、繰り返される興奮を支えます。
チャネルは信号を動かし、ポンプは信号を生み出せる環境を守ると捉えると、両者の役割を整理しやすいでしょう。
濃度勾配、電気化学的勾配、平衡電位、しきい値を順に結び付けることで、膜電位と興奮の仕組みをより立体的に理解できます。